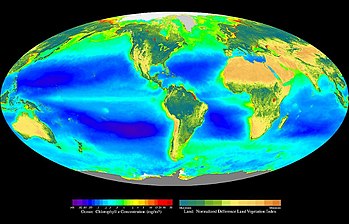
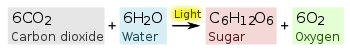
فتوسنتز ( عکس … و سنتز ) – تبدیل انرژی کوانتومی نور به انرژی پیوند شیمیایی توسط گیاهان عالی ، جلبک ها و باکتری های فتوسنتز کننده . این انرژی توسط کلروفیل و سایر رنگدانه ها جذب می شود . در فرآیند فتوسنتز، گیاه CO 2 را از هوا جذب می کند و در نتیجه تجزیه آب در برگ، اکسیژن آزاد آزاد می کند. در این زمان ترکیبات آلی تشکیل می شود که به عنوان غذای خود گیاه و کل دنیای حیوانات استفاده می شود . مردم همچنین از آنها به عنوان سوخت ( زغال سنگ ، نفت و غیره) استفاده می کنند. اکسیژن آزاد شده شرط لازم برای وجود حیات هوازی روی زمین است. از طریق فتوسنتز، سالانه 1000 میلیارد روی زمین تولید می شود. بیش از t ترکیبات آلی تشکیل می شود (تقریبا نیمی از این توده آلی سهم فتوسنتز گیاهان اقیانوسی و دریایی است ). در این زمان حدود 200 میلیارد. t CO 2 توسط گیاهان و 145 میلیارد جذب می شود. T O 2 در جو منتشر می شود. تصور می شود که اکسیژن موجود در جو مدرن کاملاً منشا فتوسنتزی دارد. فتوسنتز تنها فرآیند بیولوژیکی است که انرژی آزاد یک سیستم زنده را افزایش می دهد. همه بقیه (به جز شیمی سنتز) با هزینه انرژی پتانسیل انباشته شده در طول فتوسنتز انجام می شوند. مقدار کل سالانه این انرژی حدود 3×10 21 ژول است و به مراتب بیشتر از انرژی مصرف شده سالانه توسط انسان است (3X10 20 J ).
منابع تاریخی
کشف فتوسنتز به دهه 70 قرن 18 برمی گردد. مطالعه او بر اساس آثار جان پریستلی ، ژان سنبیه ، نیکلاس سوسور ، آی. اینگنپاوزی، آی. مایر و سایر مطالعات بنیادی که از طریق آنها مشخص شد که گیاهان در نور دی اکسید کربن را جذب می کنند ، اکسیژن آزاد می کنند و در این فرآیند مواد آلی ایجاد می کنند که انرژی نور خورشید در آنجا جمع می شود. در نیمه دوم قرن نوزدهم، کلیمن تیمیریازف روشن کرد که ورودی انرژی نور در تبدیل بیوشیمیایی کربن از طریق رنگدانه سبز – کلروفیل اتفاق می افتد. در سال 1905 دانشمند انگلیسی F. بلکمن کشف کرد که فتوسنتز شامل واکنشهای سریع نور و واکنشهای نسبتاً کند تاریکی است. توجیه بیوشیمیایی برای وجود فازهای روشن و تاریک در سال 1937 به دست آمد (R. Hill). در سال 1931، میکروبیولوژیست آمریکایی K. نیل ثابت کرد که باکتریهای فوتوتروف در طول فتوسنتز O 2 آزاد نمیکنند ، زیرا در طول جذب CO2، سولفید هیدروژن ، تیوسولفات و سایر بسترهای متفاوت از آب را اکسید میکنند. بنابراین، اساس این دیدگاه ایجاد شد که СO 2 یک فرآیند کاهش اکسیداسیون است، که در آن کاهش کربن با اکسیداسیون دهنده هیدروژن (H2O) ترکیب می شود . در سال 1941، مستقل از یکدیگر، A. وینوگرادوف و ام. تیتز در اتحاد جماهیر شوروی ، ای. روبن و دیگران در ایالات متحده کشف کردند که منبع اکسیژن برای فتوسنتز گیاهان عالی آب است و نه CO 2 ، همانطور که قبلاً تصور می شد.
از دهه 50 قرن بیستم، مطالعه فشرده مکانیسم های فیزیکی و شیمیایی فتوسنتز آغاز شد. این امر با توسعه فنی تجربی بسیار سریع، که منجر به ایجاد روشهای جدید و استفاده مؤثر از آنها شد، تسهیل شد. ابتدا مکانیسمهای ظریف مشارکت کلروفیل در فرآیند فتوسنتز، وجود دو واکنش فتوشیمیایی و واکنشهای اکسیداسیون-کاهشی فتوسنتز، فسفوریلاسیون فتوسنتز، تبدیل کربن در فتوسنتز، مکانیسم فتولیز آب، واکنشهای کلروپلاستهای فعال عملکردی مشخص شد .
فتوسنتز در گیاهان عالی، جلبک ها و باکتری های فتوسنتزی
در گیاهان و جلبک ها، دهنده هیدروژن (الکترون) و منبع اکسیژن آب است که تحت فتولیز (تجزیه در نور) قرار می گیرد و منبع کربن و گیرنده هیدروژن دی اکسید کربن است. باکتری های فتوسنتز کننده در طول فتوسنتز اکسیژن آزاد نمی کنند یا از آن استفاده نمی کنند (بیشتر آنها بی هوازی اجباری هستند). به جای آب، از ترکیبات معدنی ( سولفید هیدروژن ، تیوسولفات ، هیدروژن مولکولی ) یا از مواد آلی ( اسید لاکتیک ، ایزوپروپیل الکل و غیره) به عنوان دهنده هیدروژن ( الکترون ) استفاده می کنند . منبع کربن در اینجا نیز در بیشتر موارد CO 2 است . برخی از آنها از اسید استیک نیز استفاده می کنند . بنابراین، در انواع مختلف گیاهان، فتوسنتز می تواند با استفاده از هیدروژن (الکترون)، دهنده های مختلف (DH2) و پذیرنده ها (A) انجام شود . به طور کلی این را می توان با معادله زیر بیان کرد:
D·H 2 + نور AH 2 +v که در آن AH 2 نماد فتوسنتز است.
ساختارهای دستگاه فتوسنتز
واحد ساختاری دستگاه فتوسنتز گیاهان عالی اندامک های سبز رنگ سلول به نام کلروپلاست است . تعداد کلروپلاست ها در یک سلول بسته به گونه گیاهی متفاوت است و می تواند 20-100 باشد. کلروپلاست از بیرون توسط یک غشای دوتایی احاطه شده است و غشای آن نامیده می شود. توده پروتئین بدون ساختار محتویات کلروپلاست – استروما عمدتاً حاوی آنزیم ها و سایر مواد فعال بیولوژیکی است که بیش از نیمی از آنها آنزیم ریبولوزبی فسفات-کربوکسیلاز/اکسیژناز است. در اینجا است که واکنش های اصلی تبدیل کربن، ورود نیتروژن و گوگرد به ترکیبات، بیوسنتز کربوهیدرات ها، یعنی. سال انجام تمام واکنش هایی که مشخصه مرحله تاریک فتوسنتز است. E. در کلروپلاست مشاهده می شود. سال قسمت ساختاری که تیلاکوئیدها تشکیل می دهند. دومی کیسه های مسطح هستند که توسط یک غشاء محصور شده اند که اغلب به صورت گرانول روی هم قرار گرفته اند. گرانول ها توسط تیلاکوئیدهای بین دانه ای بزرگتر به یکدیگر متصل می شوند. غشاهای تیلاکوئید حاوی کمپلکس های لیپوپروتئین-رنگدانه هستند که در انتقال الکترون شرکت می کنند. در ایجاد آدنوزین تری فسفریک اسید (ATP) و شکل احیا شده نیکوتین آمید آدنین دی نوکلئوتید فسفات (NaDP. H). کلروپلاست ها DNA ، RNA و ریبوزوم های خاص خود را دارند . این به آنها اجازه می دهد تا بیوسنتز برخی از پروتئین ها را انجام دهند و نوعی استقلال ژنتیکی داشته باشند، اگرچه فعالیت حیوانی آنها با کنترل ژنتیکی هسته همراه است. دستگاه فتوسنتزی اکثر جلبک ها متفاوت است. به جای کلروپلاست ها، اندامک های تخصصی دیگری دارند – کروماتوفورها . باکتری های فتوسنتز کننده و جلبک های سبز آبی در سلول های خود فقط تیلاکوئیدهایی دارند که غشاء آنها حاوی رنگدانه باکتریوکلوروفیل یا باکتریوویریدین و سایر اجزای لازم برای فتوسنتز است.
فاز تبدیل اولیه و انباشت انرژی
فتوسنتز ترکیبی از واکنش های کاهش اکسیداسیون است. با هزینه انرژی نور، الکترون ها (هیدروژن) از سطح پتانسیل اکسیداسیون-کاهش اکسیداسیون آب (+ 0.8 V) به سطح – 0.4 V حرکت می کنند که برای کاهش CO 2 به کربوهیدرات ها کافی است. در این زمان انرژی آزاد سیستم افزایش می یابد. معادله کل فتوسنتز به شکل زیر است:
СO 2 + H 2 O کلروفیل سبک С(H 2 O) + 120 کیلو کالری در مول.
برای برهمکنش بین دی اکسید کربن و مولکول های آب، انرژی کوانتومی نور توسط رنگدانه سبز – کلروفیل a جذب می شود. همراه با رنگدانه های دیگر (ب کلروفیل ، کاروتنوئیدها، فیکوبیلین ها و غیره) در غشاهای تیلاکوئید قرار می گیرد و به شکل e. سال آنتن، و همچنین مراکز واکنش. در نتیجه جذب کوانتوم نور، مولکول های کلروفیل a و رنگدانه های دیگر برانگیخته می شوند، انرژی تحریک از طریق مهاجرت به مولکول کلروفیل a که در مرکز واکنش است، از آنتن منتقل می شود. همچنین می توان الکترون ها را از طریق یک نیمه رسانا به مولکول های رنگدانه های انباشته منتقل کرد، یکی از اعمال اصلی فتوسنتز در مرکز واکنش انجام می شود – جداسازی بارها، که منجر به تشکیل یک عامل اکسید کننده اولیه و یک عامل اولیه می شود. عامل کاهنده.
2 نوع مرکز واکنش شناخته شده است که در فتوسیستم های I و II (I ps و II ps) قرار می گیرند. تقسیم آب (فتولیز) در فتوسیستم II صورت می گیرد. در اینجا، رنگدانه اصلی مرکز واکنش، شکل کلروفیل a با حداکثر جذب 680 نانومتر (P 680 )، عامل کاهنده فرضی اولیه Q (احتمالا سیتوکروم)، و عامل اکسید کننده اولیه Z (یک ترکیب ناشناخته) است. ). تحریک P 680 منجر به تشکیل Z + اکسید شده می شود که در تجزیه آب شرکت می کند که با آزاد شدن O 2 همراه است ، مکانیسم این واکنش ها الکترون را با کمک کوفاکتورهای Q به فتوسیستم I منتقل می کند. . شکل کلروفیل فتوسیستم I، که حداکثر جذب آن در 700 نانومتر است، عامل احیا کننده اولیه با فرض X است که شکل کاهش یافته آن یک الکترون را به فرودوکسین (یک پروتئین حاوی آهن) منتقل می کند. دومی نیکوتین آمید آدنین نوکلئوتید فسفات (NADP) را به NaDP-H بازیابی می کند. بخشی از انرژی نور نیز در اینجا انباشته می شود. بخش دوم انرژی به شکل ATP ذخیره می شود. با توجه به پمپ بشکه کش این فرآیند فسفوریلاسیون فتوسنتزی نامیده می شود. در طی انتقال یک الکترون از Q بازسازی شده فتوسیستم II به مرکز واکنش (P 700 ) فتوسیستم I (فتوفسفوریلاسیون غیر حلقوی) انجام می شود. تولید ATP همچنین در فرآیند فتوفسفوریلاسیون حلقوی رخ می دهد. در این حالت، الکترون X از سیتوکروم B 6 و پلاستوکینون به P 700 می گذرد و پس از تحریک به X-Regenerator باز می گردد. این امر مستثنی نیست که فوتوفسفوریلاسیون توسط مکانیسم شیمیایی شیمیایی انجام شود. به طور تجربی نشان داده شده است که روشنایی باعث تولید پتانسیل الکتریکی در سراسر غشاهای کلروپلاست می شود. لازم به تاکید است که طرح های هر دو سیستم فتوشیمیایی فتوسنتز فرضی است و در حال حاضر چندین دیدگاه مختلف وجود دارد که موضوع بحث بوده است.
فرض بر این است که باکتری های فتوسنتزی فتوسنتز را از طریق یک سیستم منفذی انجام می دهند، اما این سوال نیز نمی تواند به طور قطعی حل شده باشد. مراحل فوتوفیزیکی و فتوشیمیایی فتوسنتز در عرض 8-10-12-10 ثانیه به پایان می رسد و در این مدت تشکیل اکسید کننده و احیا کننده اولیه رخ می دهد. در نتیجه، اولین ترکیبات شیمیایی پایدار – nadf. H و ATP که انرژی کوانتومی نور قبلاً در آنها انباشته شده است. سپس از این مواد برای بازسازی CO 2 در واکنش های تاریک فتوسنتز استفاده می شود.
جذب دی اکسید کربن و تبدیل کربن در فتوسنتز
قبل از اینکه بازیابی فتوسنتزی CO 2 در کلروپلاست ها یا کروماتوفورها آغاز شود، باید با ترکیبات آلی خاصی واکنش نشان دهد. این واحدها گیرنده CO 2 نامیده می شوند . در میان آنها، شناخته شده ترین و مورد مطالعه، استر فسفریله مضاعف ریبولوز قند پنج کربنی – ریبولوز فسفات (RBF) است. با کمک آنزیم RBP-کربوکسیلاز، به CO 2 متصل می شود ، RBP به دو مولکول اسید فسفوگلیسریک (PGM) تجزیه می شود. مولکول FGM به فسفوگلیسیرین آلدهید (FgA) کاهش می یابد. ATFDA NADF در این فرآیند مشارکت دارد. H·pgA اولین محصول پایدار فتوسنتز است که به سطح کربوهیدرات کاهش می یابد. دگرگونی های بیشتر به گونه ای صورت می گیرد که از یک سو، بازسازی چرخه ای گیرنده CO 2 ، RBF، در واکنش های معکوس چرخه پنتوز و از سوی دیگر، بیوسنتز محصولات فتوسنتز صورت می گیرد. – کربوهیدرات ها این روش تبدیل کربن فتوسنتز توسط دانشمند آمریکایی M. توسط کالوین و شاگردانش در دهه 50 قرن بیستم. از آنجایی که اولین محصول پایدار فتوسنتز در این چرخه یک ترکیب سه کربنه (fgm, fga) است، آن را فتوسنتز С 3 نامیدند .
در دهه 60 قرن بیستم، مشخص شد که برخی از گیاهان علفی استوایی (به عنوان مثال، نیشکر ، ذرت ، سورگوم و غیره) در طول فتوسنتز در درجه اول ترکیبات سه کربنه بلکه چهار کربنه ( اسید استیک ، مالیک و آسپارتیک) را سنتز می کنند. اسیدها). پذیرنده اولیه CO 2 در این گیاهان اسید فسفونولپیروسوریک (FEP) است. این نوع فتوسنتز، فتوسنتز С 4 نامیده می شود . دو نوع مختلف سلول فتوسنتز کننده در برگ این گیاهان یافت می شود. در سلول های مزوفیل، کربوکسیلاسیون اولیه CO 2 به اسید فسفونولپیروسوریک با کمک آنزیم Fep-carboxylase صورت می گیرد. اسیدهای دی کربوکسیلیک تشکیل شده سپس به سلولهای مخروطهای رسانای برگ حرکت میکنند، تحت دکربوکسیلاسیون قرار میگیرند، مخازن داخلی (استخرها) با غلظت بالایی از СО 2 ایجاد میکنند و به RBP-کربوکسیلاز/اکسیژناز اجازه میدهند تا به طور مؤثر فتوسنتز را از طریق С 3 انجام دهند . چنین “تعاونی”. فتوسنتز به ویژه زمانی مطلوب است که گیاه مجبور باشد خود را با شرایط جوی گرم و ضعیف CO 2 سازگار کند. چنین وضعیتی برای مناطق گرمسیری و جغرافیایی نزدیک به آن معمول است. قبلاً تصور می شد که تبدیل کربن در طی فتوسنتز به طور کامل در کلروپلاست انجام می شود. در حال حاضر مشخص شده است که کربن بازیابی شده در طول فتوسنتز، کلروپلاست ها را به شکل استرهای فسفریک تریوزها (قندهای سه کربنه) ترک می کند و بیوسنتز هگزوز و ساکارز در سیتوپلاسم در حال انجام است. در آزمایشگاه مسئله علمی-پژوهشی فتوسنتز TSU مشخص شد که کلروپلاست تعدادی از گیاهان می توانند در حین فتوسنتز به همراه مواد مذکور بیوسنتز ایزوپرن تولید کنند که به این معنی است که واکنش های اولیه تبدیل کربن در کلروپلاست برخی از گیاهان. گیاهان منجر به FGM نمی شوند، بلکه به استیل کوآنزیم A. با بیوسنتز A منجر می شوند، همانطور که در گیاهان نوع С 3 اتفاق می افتد. در غشاهای کلروپلاست ها سلول های خاصی (ترانسلوکاز) یافت شده است که تبادل مواد غذایی بین کلروپلاست و سیتوپلاسم را کنترل می کنند و در نتیجه تبادل مواد غذایی در سلول برگ و غیره را تنظیم می کنند.
نقش فتوسنتز در بیوسفر
ظهور فتوسنتز در زمین منجر به تولید مقادیر زیادی از ترکیبات آلی غنی از انرژی و تجدید مداوم این منبع عظیم شد و در نتیجه تنوع شگفت انگیزی از جهان زنده ایجاد شد که در کنار گیاهان، موجودات نفتی (از جمله انسان) اجازه دادند. برای توسعه سریع گردش پایداری از مواد روی زمین ایجاد شد که در آن سطح زندگی با مقیاس فتوسنتز تعیین می شد. در عین حال، امروزه در شرایط انقلاب علمی و فنی که مصرف فرآورده های فتوسنتز توسط مصرف کننده اصلی آن – انسان – در حال افزایش است، به طور فزاینده ای آشکار می شود که تامین سوخت، مواد غذایی، منابع جنگلی و غیره. منابع ممکن است به زودی در سیاره ما ناکافی شوند. بنابراین حفظ بهره وری فتوسنتز، افزایش و بهینه سازی آن مشکلی است که بشریت با آن مواجه است.
فاز نور فتوسنتز
فتوسنتز یک فرآیند پیچیده و چند مرحله ای است. نقش اصلی در این فرآیند توسط کلروفیل ایفا می شود – یک ماده آلی که انرژی تابش خورشید را به انرژی پیوندهای شیمیایی تبدیل می کند .
انرژی تابش خورشید منجر به سه فرآیند می شود: تشکیل اکسیژن مولکولی در نتیجه تجزیه آب، سنتز ATP و تشکیل هیدروژن اتمی . این سه فرآیند در نور انجام میشوند و بخشهای تشکیلدهنده فاز نوری فتوسنتز هستند.